CHLAMYDOMONAS GUIDE 生命科学を支えるモデル生物
クラミドモナスとは?
Chlamydomonas reinhardtii
ノーベル賞につながった、小さな緑藻。
光を感じて泳ぐ仕組みの研究は、神経細胞を光で調べる光遺伝学へと発展しました。光合成、鞭毛・繊毛、生殖、代謝からバイオテクノロジーまで。ひとつの細胞で、多様な生命現象を調べられるモデル生物として、クラミドモナスは幅広い研究を支えています。[2][7]

01 — FROM ALGAE TO A NOBEL PRIZE
小さな緑藻の研究から、ノーベル賞へ。
2026年 ノーベル生理学・医学賞
光で開くイオンチャネルと光遺伝学に関する発見により、Karl Deisseroth(カール・ダイセロス)、Peter Hegemann(ペーター・ヘーゲマン)、Georg Nagel(ゲオルク・ナーゲル)の3氏が、2026年ノーベル生理学・医学賞の受賞者に選ばれました。その出発点のひとつが、クラミドモナスの光への応答を調べる研究です。[7]
クラミドモナスから見つかったチャネルロドプシンは、光を受けると開くイオンの通り道をつくるタンパク質です。これを神経細胞に導入して光で活動を制御する技術が、光遺伝学(オプトジェネティクス)へと発展しました。小さな緑藻の行動を調べる基礎研究が、神経回路の働きを解き明かす道具につながったのです。[8][9]
クラミドモナスが研究に使われる理由は、光を感じる性質に加えて、光合成、鞭毛の運動、生殖、細胞分裂、代謝などを、同じ生物で調べられることにあります。このページでは、その研究の広がりを紹介します。[2][3]
米国科学財団(NSF)の解説を読む02 — BASICS
まずは、どんな生き物?
クラミドモナスは、核と葉緑体をもつ単細胞の緑藻です。「単細胞」とは、ひとつの細胞がひとつの個体として生きているということ。光を利用して有機物をつくり、鞭毛を動かして泳ぎ、細胞分裂によって増えます。[1]
細胞本体の大きさ
1 mmの約100分の1。大きさは株や細胞の状態で変わります。
泳ぐための鞭毛
細胞の前方に伸び、協調して動きます。
大きな葉緑体
カップ状の葉緑体が、細胞の大きな部分を占めます。
ここで紹介する大きさと構造は、主に研究で用いられる C. reinhardtii のものです。[2]
自然界ではどこにいるの?
クラミドモナスの仲間は、淡水や湿った土壌などに見られます。C. reinhardtii にも土壌から分離された系統があり、現在よく使われる実験株の多くは、土壌由来の株から受け継がれてきました。自然の中での暮らしと、実験室での性質をつなぐ研究も続いています。[1][3]
03 — WHY CHLAMYDOMONAS?
多様な生命現象を調べられる、モデル生物。
生命の仕組みを調べるために、多くの研究者が共通して用いる生物をモデル生物と呼びます。クラミドモナス・ラインハルディは、培養、遺伝学、生化学、顕微鏡観察を組み合わせて、分子の働きから細胞の行動まで調べられるモデル生物です。[2][3]
条件を変えて育てる
光や栄養を調節し、細胞の応答を比べられます。酢酸を炭素源として与えると暗所でも育つため、光合成に異常のある株を調べることもできます。[1][2]
遺伝子と交配を使う
通常の増殖期は、染色体のセットを1組もつ半数体です。変異株や遺伝子導入に加え、交配と減数分裂を使って、遺伝子と性質の対応を調べられます。[1][2]
見て、測ってつなぐ
生きた細胞や鞭毛を観察し、光合成、運動、増殖、物質の量を測れます。構造の変化と機能の変化を照らし合わせ、仕組みを検証します。[2][10]
ゲノム情報、変異株、プラスミドなどの研究資源も共有されています。植物の光合成と共通する仕組みや、動物の繊毛と共通する分子機構を、同じ単細胞の実験系で調べられる点が大きな強みです。[1][2][10]
他の生物との比較では、共通する機構と、それぞれの生物に固有の性質を区別します。例えば、クラミドモナスで調べた繊毛の基本機構を、ヒトの臓器の働きへ結び付けるには、別の実験系での検証も必要です。[10]
04 — FIELDS OF RESEARCH
小さな細胞から広がる、8つの研究分野。
光合成をする、泳ぐ、光を感じる、交配する、増える、代謝を切り替える。こうした性質を手掛かりに、さまざまな分野で研究が進められています。知りたい現象に応じて、使う遺伝子や観察・測定の方法を選びます。[2][3]
光合成・葉緑体
光をどうエネルギーへ変える?
光合成の電子の流れ、強い光から身を守る仕組み、葉緑体の遺伝子発現などを調べます。光合成が変化した変異株を育てて比較できることが、反応の仕組みを解く強みになります。[2][3]
鞭毛・繊毛
細胞はどう動き、構造をつくる?
鞭毛は、ヒトを含む動物の繊毛と共通する基本構造をもちます。運動を生む分子モーター、内部で部品を運ぶ鞭毛内輸送(IFT)、長さの調節や再生を研究し、繊毛の異常に関わる機構の理解にも役立てます。[10]
生殖・遺伝
細胞は相手をどう認識し、融合する?
+と−の接合型の配偶子が出会うと、認識・接着・融合を経て接合子をつくります。接合子は発芽時に減数分裂し、半数体の子孫を生みます。この生活環を使って、生殖の分子機構と遺伝を調べます。[1][3]
細胞周期・サイズ制御
細胞は、いつ、何回分裂する?
成長した細胞が続けて分裂し、2、4、8個などの娘細胞を生む多分裂を行います。細胞の大きさや光・栄養条件を変えながら、成長とDNA複製・細胞分裂のタイミングを結ぶ仕組みを調べられます。[11]
光受容・走性
光を感じて、泳ぎ方をどう変える?
光へ近づく、または遠ざかる走光性を、光受容体、細胞内の信号、鞭毛の協調運動に分けて調べます。刺激の受容から行動までを、ひとつの細胞の中で追えることが特徴です。チャネルロドプシンの研究も、ここから広がりました。[3][4][8]
CO₂濃縮・ピレノイド
水中の炭素をどう利用する?
周囲の無機炭素を取り込み、炭素固定酵素Rubiscoの近くにCO₂を集めるCO₂濃縮機構(CCM)を調べます。Rubiscoが集まるピレノイドの形成や、環境に応じた輸送・調節を研究できます。[5]
ピレノイドを詳しく読む代謝・環境適応
栄養に応じて、物質の使い道をどう変える?
光合成と呼吸、酢酸の利用、窒素などの栄養への応答、デンプンや脂質の蓄積を調べます。得た炭素とエネルギーを、成長や貯蔵へどう振り分けるかを検証するモデルになります。[3][14]
バイオテクノロジー
細胞の仕組みを、ものづくりへつなげるには?
脂質などの物質生産に向けた代謝の改変、組換えタンパク質の生産、酸素が乏しい条件での水素生成などが研究されています。生産性に加え、増殖や培養条件との両立も重要な課題です。[12][13][14]
05 — CELL STRUCTURE
細胞の中には何がある?
泳ぐための鞭毛、光合成を担う葉緑体、遺伝情報を収める核。さまざまな構造が、ひとつの細胞の中で協調して働いています。Engelら(2015)のクライオ電子線トモグラフィー研究から、細胞の構造を説明する模式図と、実際の断層像を紹介します。[6]

- 鞭毛・繊毛
- 細胞を泳がせる構造です。動物の運動性の繊毛と共通する基本構造をもちます。
- 葉緑体
- 光のエネルギーを使って光合成を行います。内部にはピレノイドや、光合成の反応を担う膜があります。
- 核
- 多くの遺伝子を収め、細胞のさまざまな働きに必要な情報を保持します。
- 眼点
- 光の方向を感じる仕組みに関わります。葉緑体内の色素層と、近くの細胞膜にある光受容体が協調して働きます。
- ピレノイド
- 葉緑体内でCO₂固定酵素Rubiscoが集まる構造です。CO₂濃縮機構の中心として、炭素固定を支えます。
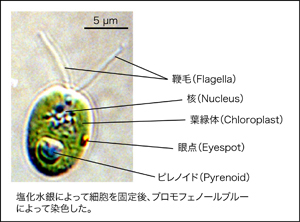
写真でも、部位を確かめる。
固定・染色した細胞の光学顕微鏡写真です。模式図と見比べると、小さな細胞の中に複数の構造があることが分かります。写真中のスケールバーは5 µmです。
06 — LIGHT AS ENERGY & INFORMATION
光は、エネルギーにも情報にもなる。
エネルギー源としての光:光合成
葉緑体では、光のエネルギーを使って、CO₂を有機物へ取り込む光合成が進みます。研究者は、電子を受け渡すタンパク質や、余分な光エネルギーを逃がす仕組みを調べます。酢酸を与えれば、光合成に異常のある株も育てられるため、どの遺伝子がどの過程に必要なのかを調べられます。[2][3]
情報としての光:走光性
眼点のある場所では、葉緑体内の色素層と、近くの細胞膜にある光受容タンパク質が協調して働きます。光を受け取った信号が鞭毛の運動へ伝わると、泳ぐ方向が変わります。光の方向に応じた移動を走光性(光走性)と呼びます。[3][4]
条件によって、光へ近づくことも、光から遠ざかることもあります。眼点は景色を見る目ではなく、光の方向に応じて行動する仕組みの一部です。光をエネルギーとして使う反応と、情報として受け取る反応を区別し、その両者がどう関係するかも調べられます。[3]
07 — READING GUIDE
学年・専門別の解説
小学生から研究者まで、読みたい見出しを開いてご覧ください。学年や専門は目安です。どの解説からでも読めます。
小学生向け小さな生きものから、たくさんの発見へ
中学生向け光合成、運動、増殖をひとつの細胞で調べる
高校生向け遺伝子と、光合成・運動・生殖を結び付ける
クラミドモナス・ラインハルディは、光合成、運動、生殖、代謝などを調べるモデル生物です。鞭毛はヒトの繊毛と共通する基本構造をもち、その形成や運動の研究に役立っています。光受容タンパク質チャネルロドプシンの研究は、神経細胞を光で制御する光遺伝学へ発展しました。[8][9][10]
通常の増殖期には、染色体のセットを1組もつ半数体として育ちます。条件に応じて、+と−の接合型の配偶子が融合し、染色体のセットを2組もつ接合子をつくります。接合子は発芽時に減数分裂し、半数体の子孫を生みます。この生活環を利用して、遺伝子と性質の関係を調べられます。[1][3]
例えば、光合成や鞭毛の運動が変化した変異株を、比較対象と条件を揃えて調べます。CO₂を炭素固定酵素の近くへ集める仕組みや、栄養に応じて脂質を蓄える仕組みも研究できます。さらに、遺伝子を導入して目的のタンパク質をつくらせる応用研究にも使われています。[5][13][14]
大学生向け細胞の多様な仕組みを、同じ実験系で考える
クラミドモナスの特徴は、光合成、鞭毛運動、光受容、細胞周期、生殖、代謝を、同じ単細胞の系で研究できることにあります。葉緑体の働きは植物の光合成研究へ、鞭毛の基本構造や組み立ては動物の繊毛研究へつながります。細胞の成長と分裂を時間的に分けて調べることもできます。[3][10][11]
通常は半数体として増殖し、交配と減数分裂を利用して遺伝子と性質の対応を調べられます。変異株や遺伝子導入株の比較、顕微鏡観察、生化学・生理測定を組み合わせることで、細胞内の構造と機能の関係を検証できます。[1][10][11]
光合成で得た炭素を、成長やデンプン・脂質の蓄積へどう振り分けるかも重要な問いです。CO₂濃縮機構(CCM)による炭素の取り込み、酢酸の利用、酸素が乏しい条件での水素生成などを比較できます。株の背景、光、栄養、炭素源、酸素条件を確認し、どの条件で成り立つ結果なのかを考えることが、実験を理解する入口になります。[3][5][12][14]
大学院生向け遺伝学・観察・測定を組み合わせ、機構を検証する
クラミドモナスでは、光合成装置、鞭毛・繊毛、生殖、細胞周期、代謝を、遺伝学と生化学、ライブ観察を組み合わせて調べられます。例えば、鞭毛の部品を運ぶ鞭毛内輸送(IFT)と長さの制御、配偶子の認識と融合、細胞サイズと分裂回数、栄養不足に応じた脂質蓄積など、異なる階層の問いを扱えます。[1][10][11][14]
変異株で現れた性質を、交配による遺伝解析や、対象遺伝子を戻す補完で確かめます。さらに、運動、光合成、細胞分裂、物質の蓄積などを時間軸に沿って測り、変化の順序と機能の関係を検証します。例えば遊泳が変化したとき、鞭毛の構造、光の受容、エネルギー供給のどこに原因があるかを、複数の測定から絞り込めます。[3][4][10]
株の遺伝的背景、増殖状態、光、栄養、CO₂や有機炭素源、酸素条件は、揃えるか意図した変数として扱います。水素や脂質などの生産研究でも、生産量とともに増殖や他の代謝への影響を調べることで、基礎機構の理解と応用設計を結び付けられます。[12][14]
研究者向け保存された細胞機構と、環境依存の生理をつなぐ
クラミドモナスは、光合成、鞭毛・繊毛の形成と運動、感覚応答、生殖、細胞周期、代謝制御を、共通の遺伝的基盤で解析できる実験系です。光合成真核生物としての炭素・エネルギー利用を調べながら、動物と保存された繊毛の分子機構を検証できます。成長と多分裂の関係、配偶子の認識・膜融合、CO₂濃縮と細胞内の構造形成など、解析対象は生活環の各段階に及びます。[1][5][10][11]
単相増殖と、接合・減数分裂を経る生活環を利用し、遺伝子の機能、組合せ、遺伝を検証できます。遺伝学的操作と補完、定量的ライブ観察、生化学・生理測定を組み合わせ、構造、輸送、信号伝達、代謝の間の因果関係を検討します。例えば、走光性の変化を光受容系だけで説明する仮説には、鞭毛運動や代謝状態の変化による説明も対置して検証できます。[1][3][4][10]
応用研究では、脂質生産、組換えタンパク質発現、水素生成などを対象に、増殖、代謝配分、培養条件の関係を解析できます。株の背景、光、栄養、炭素源、酸素条件を明示し、実験室での機構と培養規模を広げた際の性質をそれぞれ評価することが重要です。他のモデルや自然由来株との比較によって、保存された機構と種・系統・条件に固有の性質を切り分けられます。[3][12][13][14]
08 — OUR RESEARCH
山野グループが取り組む研究
広がりのあるクラミドモナス研究の中で、山野グループは、光合成を支えるピレノイドとCO₂濃縮機構に取り組んでいます。分子が集まって反応の場をつくる仕組み、環境に応じた働きの調節、細胞分裂に伴う構造の継承を、遺伝学・イメージング・生理解析などで調べています。
09 — QUESTIONS
よくある疑問
植物なのですか? 動物なのですか?
クラミドモナスは緑藻の一種です。陸上植物と共通する光合成の仕組みをもち、鞭毛は動物の繊毛と共通する基本構造をもちます。この特徴が、植物科学と細胞生物学のさまざまな研究に役立っています。[2][10]
細胞はどうやって増えるのですか?
通常は細胞分裂で増えます。成長した細胞が続けて分裂して複数の娘細胞を生む、多分裂という特徴があります。また、+と−の接合型の配偶子が融合する有性生殖も行い、接合子は発芽時に減数分裂します。[1][11]
ヒトの繊毛の研究にも使えるのですか?
鞭毛・繊毛をつくる部品や内部の輸送、運動の仕組みには、ヒトと共通するものが多くあります。クラミドモナスでは、変異株の比較や鞭毛の再生の観察を通じて、こうした基本機構を調べられます。[10]
10 — REFERENCES
参考文献・関連リンク
生物の特徴と研究の背景を、公式リソースと学術文献をもとに紹介しています。より詳しく知りたい方は、次の資料をご覧ください。
- Chlamydomonas Resource Center. About Chlamydomonas. 研究リソース機関による公式解説 ↗
- Salomé PA & Merchant SS(2019)A Series of Fortunate Events: Introducing Chlamydomonas as a Reference Organism. The Plant Cell 31, 1682–1707. 特徴と研究史の総説 ↗
- Sasso S, Stibor H, Mittag M & Grossman AR(2018)From molecular manipulation of domesticated Chlamydomonas reinhardtii to survival in nature. eLife 7, e39233. 自然界での暮らしと研究の総説 ↗
- Mittelmeier TM et al.(2013)Independent localization of plasma membrane and chloroplast components during eyespot assembly. Eukaryotic Cell 12, 1258–1270. 眼点の構成と形成の原著論文 ↗
- 山野 隆志(2025)地球規模の炭素循環を担う藻類ピレノイド ~構造・機能・収斂進化の最前線~。Algal Science and Technology 18, 13–25. 研究室の総説PDF ↗
- Engel BD et al.(2015)Native architecture of the Chlamydomonas chloroplast revealed by in situ cryo-electron tomography. eLife 4, e04889. 細胞の模式図とクライオ断層像の原著論文 ↗
- U.S. National Science Foundation(2026年10月14日)NSF BIO congratulates winners of the 2026 Nobel Prize in Physiology or Medicine. 受賞とクラミドモナス研究のつながり ↗
- Nagel G et al.(2003)Channelrhodopsin-2, a directly light-gated cation-selective membrane channel. PNAS 100, 13940–13945. 光で開くチャネルの原著論文 ↗
- Boyden ES et al.(2005)Millisecond-timescale, genetically targeted optical control of neural activity. Nature Neuroscience 8, 1263–1268. 光遺伝学の原著論文 ↗
- Marshall WF(2024)Chlamydomonas as a model system to study cilia and flagella using genetics, biochemistry, and microscopy. Frontiers in Cell and Developmental Biology 12, 1412641. 鞭毛・繊毛研究の実験系と意義の総説 ↗
- Cross FR & Umen JG(2015)The Chlamydomonas cell cycle. The Plant Journal 82, 370–392. 細胞周期と多分裂の総説 ↗
- Melis A et al.(2000)Sustained photobiological hydrogen gas production upon reversible inactivation of oxygen evolution in the green alga Chlamydomonas reinhardtii. Plant Physiology 122, 127–136. 特定の培養条件での水素生産の原著論文 ↗
- Rasala BA et al.(2010)Production of therapeutic proteins in algae, analysis of expression of seven human proteins in the chloroplast of Chlamydomonas reinhardtii. Plant Biotechnology Journal 8, 719–733. 組換えタンパク質生産の原著論文 ↗
- Boyle NR et al.(2012)Three acyltransferases and nitrogen-responsive regulator are implicated in nitrogen starvation-induced triacylglycerol accumulation in Chlamydomonas. Journal of Biological Chemistry 287, 15811–15825. 窒素欠乏と脂質蓄積の原著論文 ↗